跳到主要内容

瑞兴生物|单细胞测序·空间转录组·三代测序·RNA调控

多组学技术服务与深度数据挖掘 · 从研究设计到实验验证的全流程支持
Oxford Nanopore · 三代测序

含 poly(A) 尾全长转录组测序
ONT-PAlrRNA-seq

常规全长转录组测到 poly(A) 尾就停了——建库时用的 oligo(dT) 引物正好落在尾巴上,尾巴本身的长度和组成被丢掉。ONT-PAlrRNA-seq 换了一种接法,把尾巴完整地留在测序读段里,于是一份数据同时给出 isoform 结构和 poly(A) 尾长度,连尾里掺了几个非 A 碱基都能读出来。

  • 全长 isoform + 尾长
  • 尾内非 A 残基
  • UMI 绝对定量
  • APA / 3′UTR
  • 组织 / 细胞 / 全血 / 植物
1份数据同时给 isoform 结构与 poly(A) 尾长
≥2µg RNARNA 起送量,与常规全长转录组一致
UMI定量每分子唯一标签,扣除扩增重复
非 A残基尾内掺入的 U / G / C 可识别
01

技术简介

poly(A) 尾是成熟 mRNA 3′ 端那段由一串腺苷酸组成的尾巴。它不只是个装饰:尾巴越长,通常越容易被 poly(A) 结合蛋白占据,mRNA 越稳定、翻译效率越高;去腺苷化酶把尾巴缩短,则是 mRNA 走向降解的第一步。所以尾长不是一个固定值,而是随发育阶段、组织、外界刺激动态变化的调控量。

过去这一层信息很难测。原因很直接:二代测序对一串连续相同碱基(同源多聚序列)读不准,poly(A) 恰恰是最典型的同源多聚序列。纳米孔测序按电流信号判读碱基,对这类序列不敏感,因此能直接读出尾巴的长度和组成。

Nanopore 官方最新版的长读长转录组建库试剂盒同样能测 poly(A) 尾长度,但建库原理与 ONT-lrRNA-seq 不同。为便于区分,我们把这套新版建库测序技术称为 ONT-PAlrRNA-seq(Oxford Nanopore Technologies Poly(A) inclusive long-read RNA sequencing)。无论走 cDNA 路线(本技术)还是 DRS 路线,纳米孔测序都能揭示 poly(A) 尾内部的非 A 残基。

02

技术优势

完善基因注释

发现新的转录本和基因,获得更全面的转录组图谱。对注释不全的物种,这一步往往是项目里最有价值的部分。

三个层面的差异分析

差异表达基因(DEG)、差异表达转录本(DET)、差异使用转录本(DTU)。DTU 看同一个基因里几条 isoform 的比例是否换过,这类变化在基因总表达量里看不出来。

结构分析更完整

在可变剪接(AS)、多聚腺苷酸化位点(APA)和 3′UTR 长度之外,多一项 poly(A) 尾长度。APA 决定尾巴加在哪里,尾长决定这条 mRNA 稳定多久,两者合起来才是完整的 3′ 端调控图景。

转录本分辨率

在转录本水平解析调控机制。尾长信息是挂在具体 isoform 上的——同一个基因的不同 isoform 可以有完全不同的尾长分布,这是基因水平定量拿不到的分辨率。

UMI 绝对定量

建库时给每个原始分子带上唯一分子标识(UMI),同一个分子的多次 PCR 扩增只计一次,把扩增偏好性从定量里扣掉。做尾长分布这类精细比较时,这一步很关键。

03

技术原理

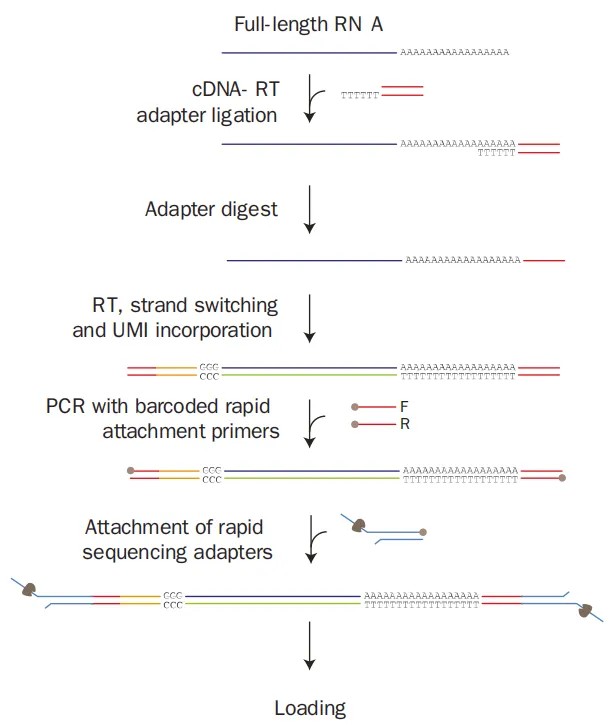
常规全长转录组建库用 oligo(dT) 引物去"接住"poly(A) 尾,引物结合的位置就是尾巴的起点,尾巴本身不进入后续测序读段。本技术换了个思路:不去结合尾巴,而是用连接酶接上去。

具体做法是把一段"固定序列 + 6 个 T 碱基突出"的双链引物,用 T4 DNA 连接酶连到 RNA 3′ 末端的最后一个 A 碱基上。因为突出端是 6 个 T,它会与尾巴末端的 A 配对,连接点就落在尾巴的最末端——这样整条 poly(A) 尾都被夹在 RNA 主体和接头之间,完整保留。随后把双链引物中没被连接的那条链消解掉,再做逆转录。

测出来的读段因此包含:转录本本体序列 + 完整 poly(A) 尾 + UMI。纳米孔对连续相同碱基的判读能力,让尾巴长度和其中掺入的非 A 残基(U、G、C)都能被识别出来。

04

实验流程

1

oligo(dT) 磁珠捕获

用带 oligo(dT) 的磁珠富集带 poly(A) 尾的 RNA

2

T4 连接酶接头

把"固定序列 + 6 个 T 突出"的双链引物连接到 RNA 3′ 末端最后一个 A 上

3

消解多余链

消解双链引物中未被连接的那条链

4

逆转录

加入 RT 引物进行逆转录

5

加 TSO + UMI

通过链置换把 TSO 与 UMI 序列加到 cDNA 3′ 末端

6

PCR 与建库

引物 PCR 扩增形成双链 cDNA,末端修平后连接 ONT 测序接头

ONT-PAlrRNA-seq 建库流程:oligo dT 捕获、T4 DNA 连接酶连接 6T 突出双链引物至 RNA 3 末端、消解多余链、逆转录、TSO 与 UMI 链置换添加、PCR 与连接接头
ONT-PAlrRNA-seq 建库:连接点落在尾巴末端,poly(A) 尾完整保留在测序读段内
05

送样要求

样本类型ONT-PAlrRNA-seq说明
RNA 总量≥2 µg不建议直接寄送 RNA,优先寄组织或细胞
RNA 纯度OD260/280 ≥2蛋白或酚残留会压低比值
RNA 完整性RIN ≥7.0尾长分析对完整性敏感,降解会直接干扰尾长判定
细胞≥1×10⁷ 个TRIzol 充分裂解后 −80 ℃ 保存,干冰运输
动物组织 · 心、脑、肾、肺≥50 mg新鲜组织块尽量 ≤0.5 cm;去除结缔组织与脂肪;预冷 1×PBS 或生理盐水洗去血迹,液氮速冻 1 h 后 −80 ℃ 保存,干冰运输
动物组织 · 肝、脾、胃≥20 mg
动物组织 · 皮肤、血管、软骨、骨等坚韧组织≥100 mg
植物组织≥500 mg选健康幼嫩组织,液氮速冻 20 min 以上,干冰运输
全血4 mL按血液样本常规采血管要求采集与运输
免疫细胞干体积 ≥20 µL一般 10 µL 细胞干体积对应约 1×10⁶ 个细胞
做尾长相关的课题,取样环节要更讲究:poly(A) 尾是动态调控量,样本离体后的处理时间、冻存方式都会影响它。建议取样后尽快液氮速冻,避免反复冻融;同一批比较的样本尽量在同一天、用同一套操作处理,减少批次间的尾长漂移。寄样前可先与技术顾问确认取样时间点设计。
06

分析内容

标准分析 STANDARD

  1. 全长序列识别与 UMI 去重全长 reads 判定、嵌合体过滤、按 UMI 扣除扩增重复
  2. isoform 鉴定与定量已知 / 新转录本分类、表达量矩阵
  3. poly(A) 尾长测定逐条 read 的尾长估计,按基因 / isoform / 样本汇总
  4. 尾长分布与组间比较尾长分布峰形图、组间尾长差异检验
  5. 差异表达分析DEG / DET / DTU 三个层面

高级分析 ADVANCED

  1. 尾内非 A 残基分析识别尾中掺入的 U / G / C 及其位置分布
  2. 尾长与表达量 / 稳定性的关联结合半衰期数据或降解实验,检验尾长与 mRNA 稳定性的关系
  3. APA 位点与尾长联合同一基因不同 APA 位点的尾长差异
  4. 可变剪接分析七类 AS 事件鉴定与差异剪接事件
  5. 多 RNA 类型尾长刻画mRNA、lncRNA 之外的其他 RNA 类型的多聚腺苷酸化状态
07

应用案例

案例一
IF 32.1 Nature Methods · Nano3P-seq 方法

Nano3P-seq: transcriptome-wide analysis of gene expression and tail dynamics using end-capture nanopore cDNA sequencing

Nano3P-seq:用末端捕获纳米孔 cDNA 测序做全转录组的表达与尾动态分析

期刊:Nature Methods(IF 32.1) · 发表时间:2023 年 1 月
阅读原文:doi.org/10.1038/s41592-022-01714-w
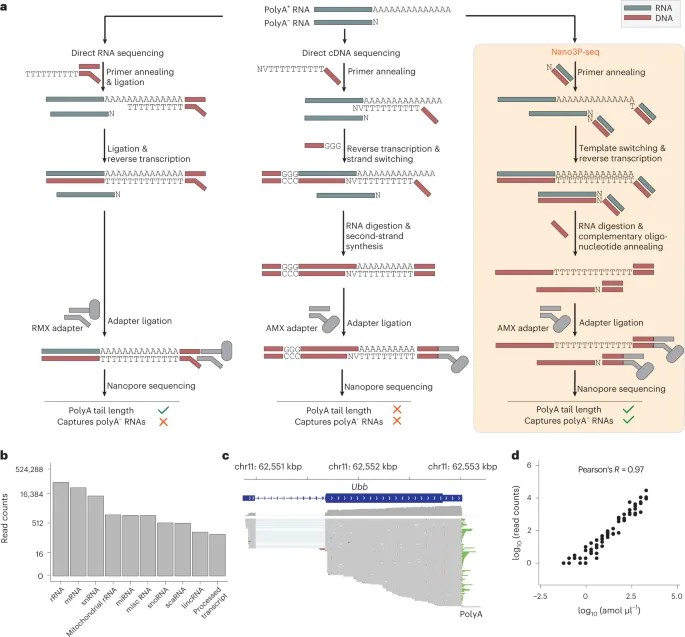
Nano3P-seq 方法原理:从 RNA 分子 3 端起始测序,同时定量 RNA 丰度、尾部组成与尾长动态
Nano3P-seq:从 3′ 端起始测序,无需 PCR 扩增或 RNA 接头连接

研究发现:Nano3P-seq 基于模板转换原理,从 RNA 分子的 3′ 端开始测序,不需要 PCR 扩增,也不需要连接 RNA 接头,而且不论分子是否带 poly(A) 尾都能测。它同时给出 RNA 丰度、尾部组成和尾长动态三项信息,并能捕获多种 RNA 类型。作者在小鼠和斑马鱼中发现,除 mRNA 和长链非编码 RNA 外,16S 线粒体 rRNA 也存在多聚腺苷酸化尾;在脊椎动物胚胎发育过程中,mRNA 尾长在 isoform 水平受到动态调控,与 mRNA 降解相关。该方法还能捕获不同长度 poly(A) 尾内部的非 A 碱基并刻画其分布。

案例二
IF 15.8 Nature Plants · 植物 poly(A) 图谱

An atlas of plant full-length RNA reveals tissue-specific and monocots–dicots conserved regulation of poly(A) tail length

植物全长 RNA 图谱揭示 poly(A) 尾长的组织特异性及单双子叶间的保守调控

期刊:Nature Plants(IF 15.8) · 发表时间:2022 年 8 月
样本:拟南芥 7 种组织(幼苗、根、地上部分、叶、花序、种子、花粉),以及玉米、大豆、水稻的地上部分
技术方法:FLEP-seq2 · 阅读原文:doi.org/10.1038/s41477-022-01224-9

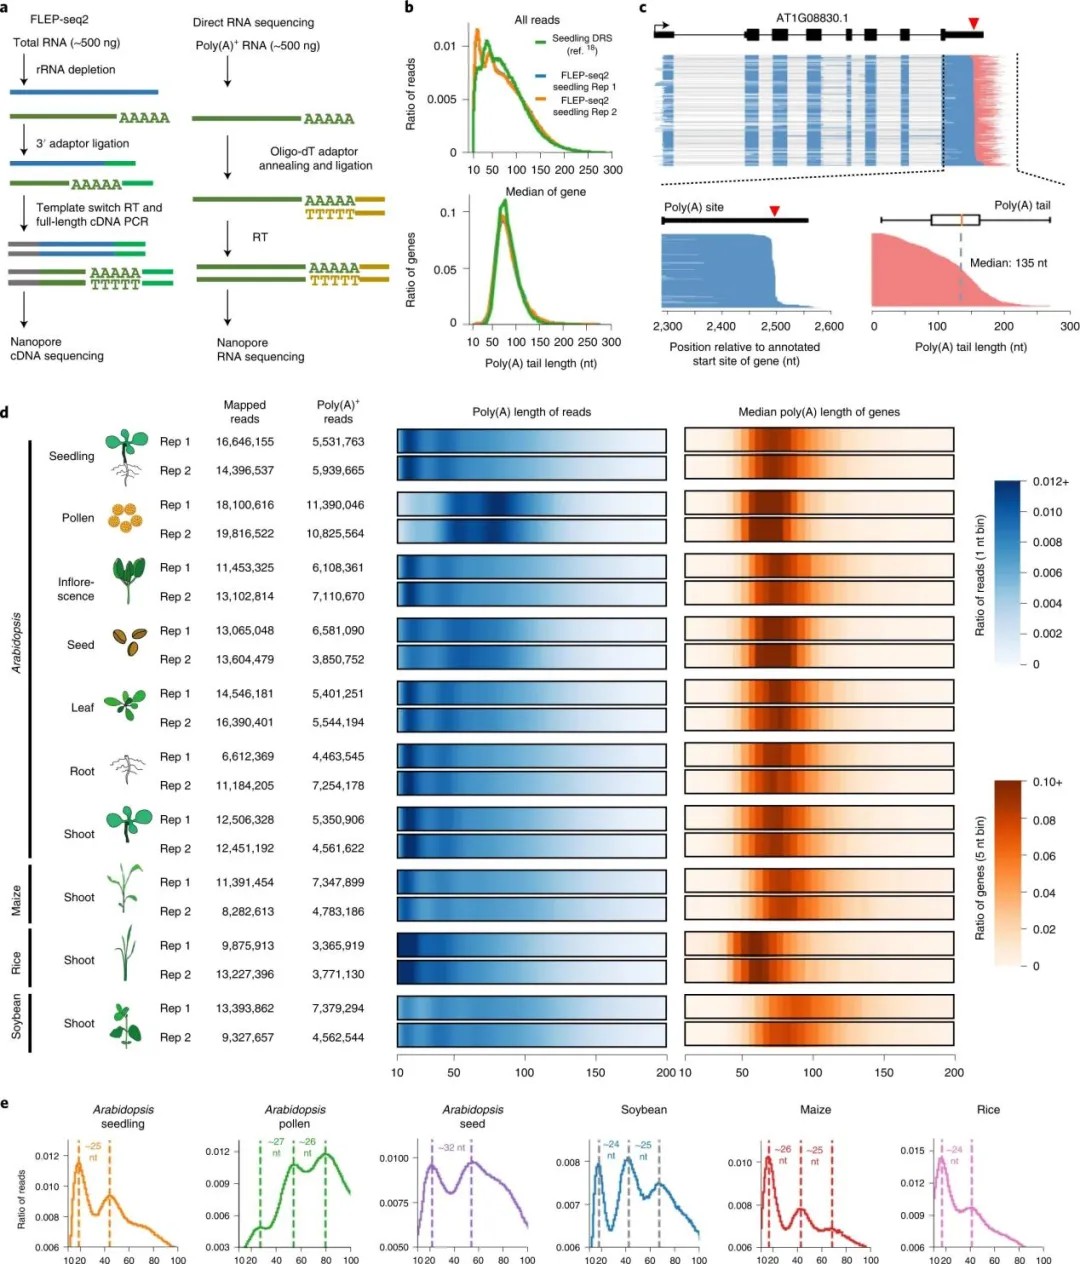
植物 poly(A) 尾长度图谱:拟南芥七种组织及玉米大豆水稻的尾长分布峰值与核质差异
植物 poly(A) 尾长图谱:组织特异峰形与核 / 质差异

研究发现:作者用一种不做 poly(A) 富集的纳米孔方法(FLEP-seq2)测带尾信息的全长 RNA,构建了 20 个文库,捕获 2.76 亿条 RNA 分子、其中 1.21 亿条带 poly(A)。多数植物组织的尾长分布有两个峰,分别在约 20 nt 和 45 nt;花粉则完全不同,峰集中在 55 nt 和 80 nt。尾长受基因特异性调控:半衰期短的 mRNA 反而带更长的尾,半衰期长的 mRNA 尾长偏短、峰值在 45 nt 附近。跨物种比较还发现,细胞核内的 poly(A) 尾长度几乎是细胞质中的两倍。

08

常见问题

PAlrRNA-seq 和普通全长转录组(lrRNA-seq)到底差在哪?
差在poly(A) 尾有没有进测序读段。lrRNA-seq 用 oligo(dT) 引物结合尾巴起始位点,尾巴本身被丢掉,产出的是 isoform 结构信息。PAlrRNA-seq 用 T4 连接酶把接头连到尾巴末端,整条尾巴夹在中间被测到,因此多出尾长和尾内非 A 残基两项数据。RNA 起始量要求一样(≥2 µg),如果只是做剪接和注释,lrRNA-seq 更划算。
它和 DRS 都能测尾长,怎么选?
PAlrRNA-seq 走 cDNA 路线:有 PCR 扩增,所需 RNA 少(≥2 µg),带 UMI 可做绝对定量,但测不到 RNA 碱基修饰。DRS 直接测 RNA 分子:不逆转录不扩增,能同时看 m6A 等修饰和尾长,但需要 ≥50 µg RNA,对样本质量要求更高。只关心尾长和 isoform,选 PAlrRNA-seq;还想看修饰,选 DRS。
尾长数据准不准?怎么验证?
纳米孔测同源多聚序列的准确性是这类方法的基础,已有方法学论文(如 Nano3P-seq)用已知尾长的标准品做过定量验证。实际项目里常用的验证手段是:与 Northern blot 或 PCR -based 的尾长测定(如 PAT assay、TAIL-seq 类方法)在少数几个基因上做交叉比对。建议在项目设计时预留 2–3 个目标基因做正交验证。
尾长和 APA 是一回事吗?
不是,但紧密相关。APA(选择性多聚腺苷酸化)决定尾巴加在哪个位置,直接影响 3′UTR 的长度和内容;尾长是加完之后那串 A 有多长。3′UTR 换了位置,可能丢掉一批 miRNA 结合位点;尾巴变短,mRNA 更容易被降解。两者可以分别统计,联合看能解释更多表达量变化。
植物样本能做吗?
能,植物是 poly(A) 尾研究的重要方向(案例二就是植物图谱)。但植物组织次生代谢物和多糖含量高,会干扰 RNA 提取,送样量要求也更高(≥500 mg)。取样时尽量选健康幼嫩部位,老龄组织 RNA 得率低、次生代谢物比例高。
需要几个生物学重复?
做组间尾长比较建议每组至少 3 个生物学重复。尾长本身是连续分布的量,单样本的峰形图可以描述状态,但要说"两组尾长分布不同"必须有重复支撑。另外尾长容易受批次影响,同一批比较的样本尽量一起处理。
项目周期多久?
样本与 RNA 质检合格后,建库测序约 3–4 周,标准分析约 2 周;尾内非 A 残基分析、尾长与半衰期关联等高级分析按需求另行约定。
Get A Solution

获得技术方案

您有任何关于组学测序的项目问题,请留言给我们。技术团队将在工作日 24 小时内给您答复。

项目咨询

技术顾问对接具体课题,先讨论科学问题再谈检测清单

027-87050299

sales@rxbio.cc

寄样收样

李欣 13237124769
武汉市东湖高新区高新二路 388 号光谷生物医药加速器 18 栋 1-2 层

提交您的项目需求

填写以下信息,我们会尽快与您联系并给出技术方案建议。

提交即表示同意我们通过电话或邮件与您联系,仅用于项目沟通。